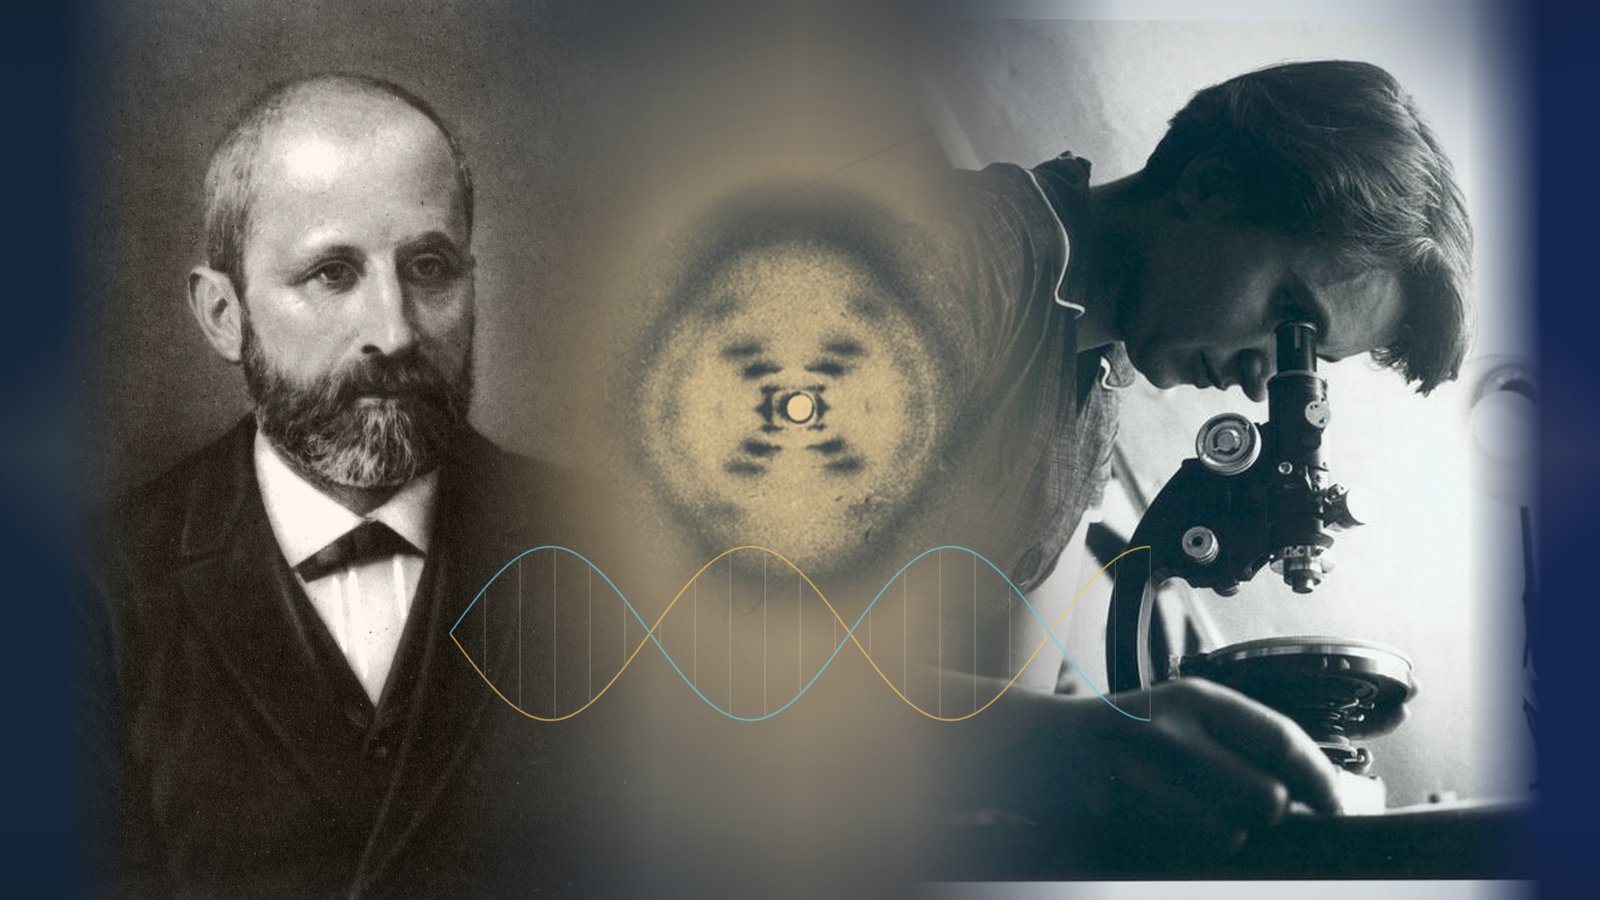
Antes de virar a escada torcida mais famosa da ciência, o DNA passou oitenta anos sendo uma substância sem função, uma hipótese rejeitada, um segredo escondido em bactérias mortas e uma fotografia que jamais contou a história inteira. Esta é a descoberta da dupla hélice sem o atalho confortável dos heróis solitários.
TESE CENTRAL
A descoberta do DNA não aconteceu em 1953 e não pertence a uma única dupla. Friedrich Miescher isolou a molécula em 1869; Frederick Griffith revelou que uma informação podia transformar células; Oswald Avery, Colin MacLeod e Maclyn McCarty identificaram essa informação como DNA; Alfred Hershey e Martha Chase reforçaram a conclusão; Erwin Chargaff encontrou as proporções químicas que denunciavam o pareamento das bases; Rosalind Franklin, Raymond Gosling, Maurice Wilkins e seus colegas mediram a arquitetura da molécula; James Watson e Francis Crick reuniram essas pistas em um modelo estrutural capaz de explicar a cópia da hereditariedade. O grande feito foi coletivo, cumulativo e profundamente humano – inclusive em seus conflitos, assimetrias de poder e falhas de reconhecimento.
NOTA DE PRECISÃO
Este artigo usa a palavra “descoberta” em quatro sentidos diferentes: encontrar a substância, demonstrar que ela transmite hereditariedade, determinar sua estrutura e explicar como essa estrutura permite a cópia da informação. Misturar essas quatro conquistas produz a versão popular da história. Separá-las devolve a cada cientista o lugar que os experimentos realmente sustentam.
Prólogo – a molécula com descobridores demais
Se alguém perguntar quem descobriu o DNA, a resposta mais conhecida virá quase automaticamente: James Watson e Francis Crick. O problema é que, quando os dois publicaram seu modelo em abril de 1953, o DNA já havia sido isolado havia mais de oitenta anos, já era conhecido como componente dos cromossomos e já existiam experiências fortes indicando que ele carregava a hereditariedade. Watson e Crick não encontraram a molécula. Resolveram sua arquitetura.
Trocar uma afirmação pela outra parece um detalhe escolar, mas altera toda a história. A versão curta transforma a ciência em uma sequência de gênios que enxergam o que ninguém enxergou. A versão real é muito mais interessante: uma substância aparece antes de existir uma pergunta capaz de recebê-la; um resultado correto é considerado simples demais para ser verdade; bactérias mortas transmitem uma propriedade a bactérias vivas; um liquidificador ajuda a decidir uma disputa molecular; uma química mede com precisão uma estrutura que outros modelam; dados atravessam instituições sem que todos saibam como serão usados; e um desenho elegante finalmente liga química, geometria e hereditariedade.
O DNA não foi descoberto em um instante. Ele precisou ser descoberto várias vezes, porque cada geração resolveu um problema e, no mesmo movimento, criou outro.
| Data | O que foi descoberto | Principais nomes |
|---|---|---|
| 1869 | A substância nuclear depois chamada DNA | Friedrich Miescher |
| 1928 | A transformação hereditária entre bactérias | Frederick Griffith |
| 1944 | O DNA como princípio transformador | Avery, MacLeod e McCarty |
| 1952 | Confirmação independente com bacteriófagos | Hershey e Chase |
| 1950-52 | Relações quantitativas entre as bases | Erwin Chargaff |
| 1951-53 | Parâmetros estruturais por difração de raios X | Franklin, Gosling, Wilkins e equipe |
| 1953 | O modelo químico da dupla hélice | Watson e Crick |
| 1958 | A replicação semiconservativa em células | Meselson e Stahl |
1. 1869 – a resposta apareceu antes da pergunta
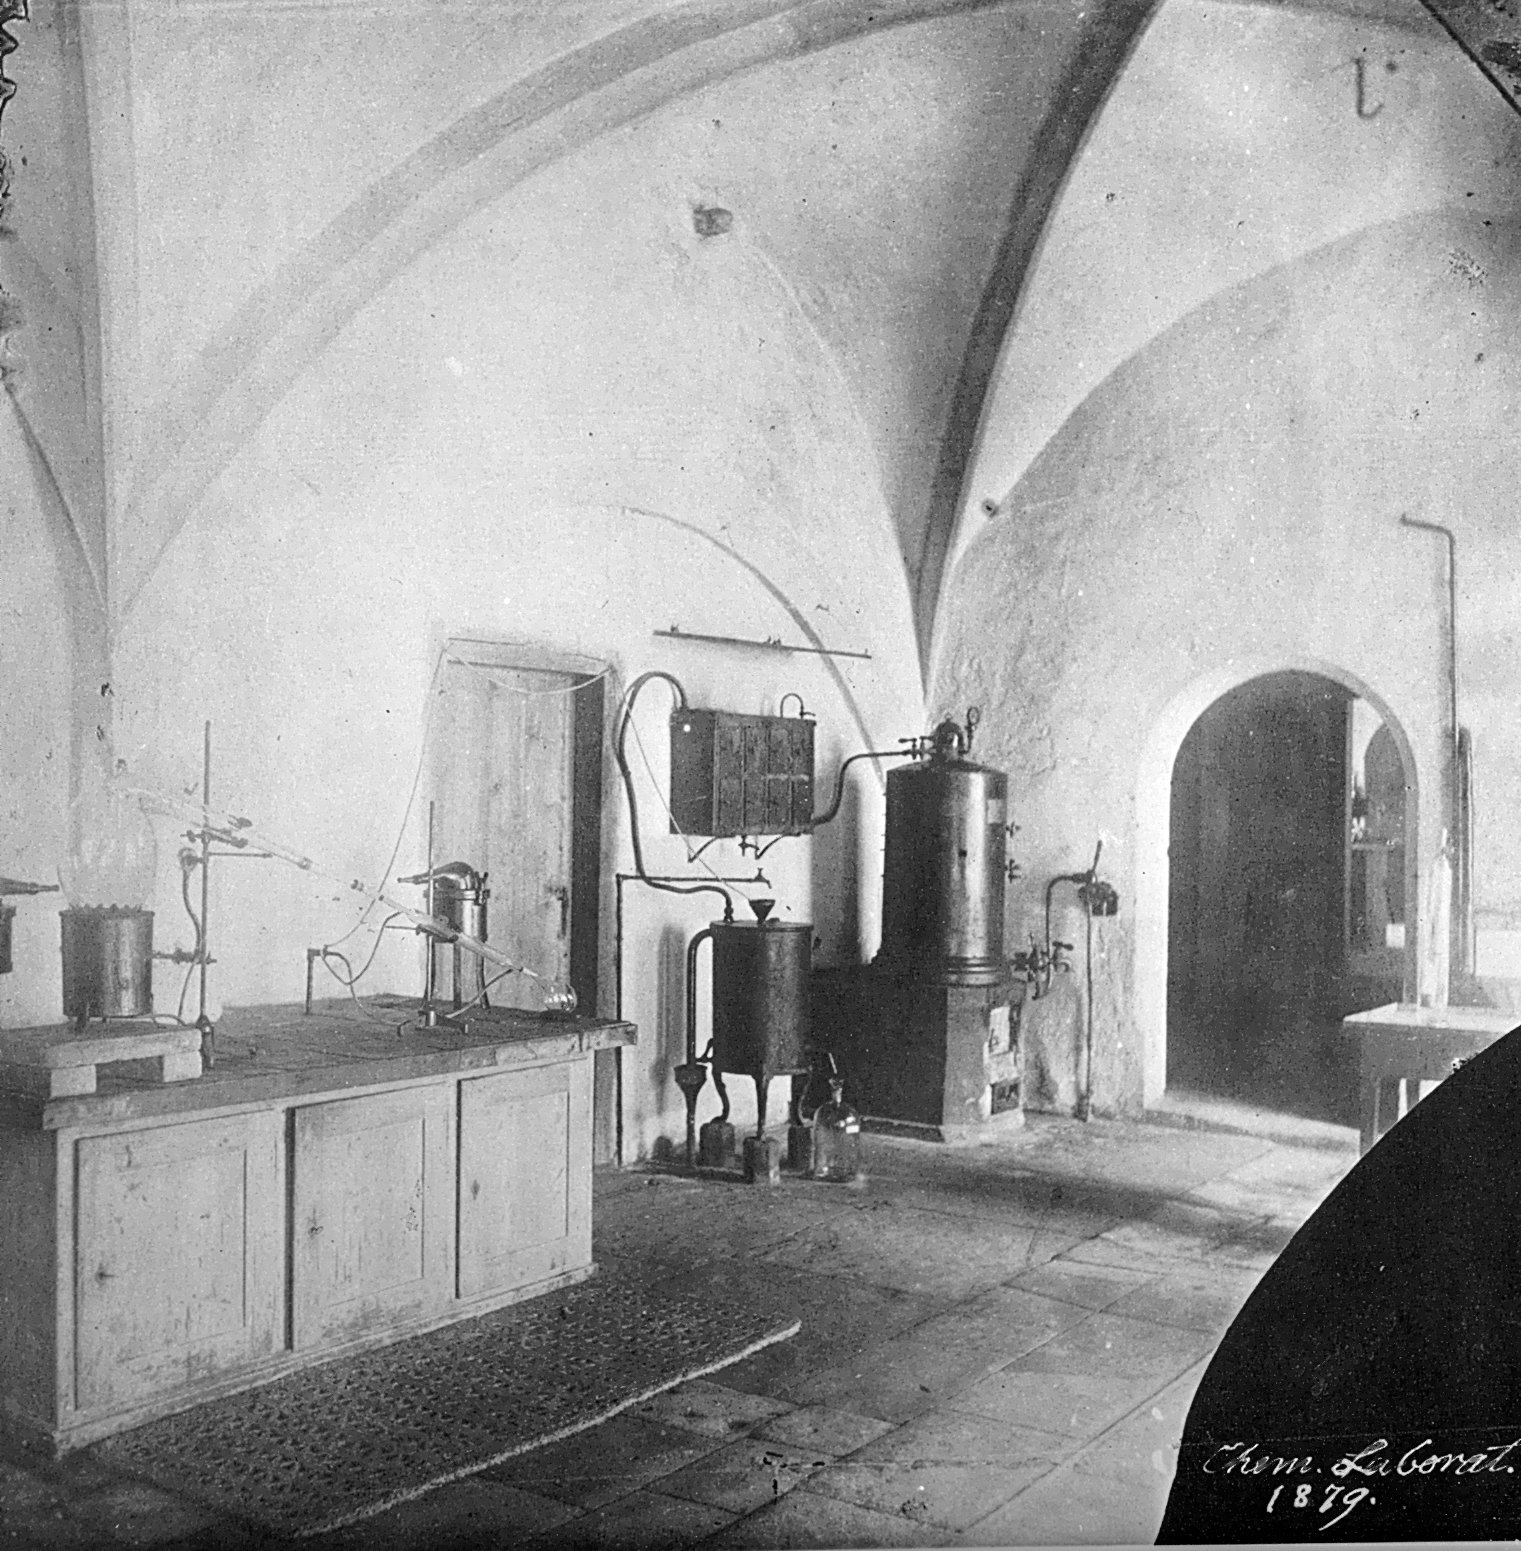
O primeiro capítulo não começa em Cambridge, nem diante de uma fotografia em forma de X. Começa no laboratório de Felix Hoppe-Seyler, instalado no Castelo de Hohentübingen, na Alemanha, e com um material que dificilmente ganharia espaço numa versão romântica da ciência: ataduras cirúrgicas cobertas de pus.
Friedrich Miescher era um jovem médico suíço interessado na química das células. Uma deficiência auditiva tornava menos atraente a prática clínica, e ele se aproximou daquilo que então se chamava química fisiológica. Para estudar os núcleos celulares, precisava de muitas células nucleadas. As ataduras descartadas por uma clínica próxima ofereciam glóbulos brancos em abundância.
Não havia centrífugas modernas, kits de extração ou instrumentos capazes de revelar uma molécula com alguns cliques. Miescher lavava as células, deixava o material sedimentar, tentava separar o núcleo do citoplasma e submetia a preparação a diferentes soluções. O processo era lento, desagradável e sensível à temperatura. Em meio aos resíduos, ele obteve uma substância que precipitava quando acidificada e voltava a se dissolver em condições alcalinas.
A nova matéria não se comportava como as proteínas conhecidas. Era rica em fósforo, continha nitrogênio e não apresentava o enxofre esperado em muitas proteínas. Como vinha do núcleo, Miescher deu a ela um nome cauteloso: nucleína.
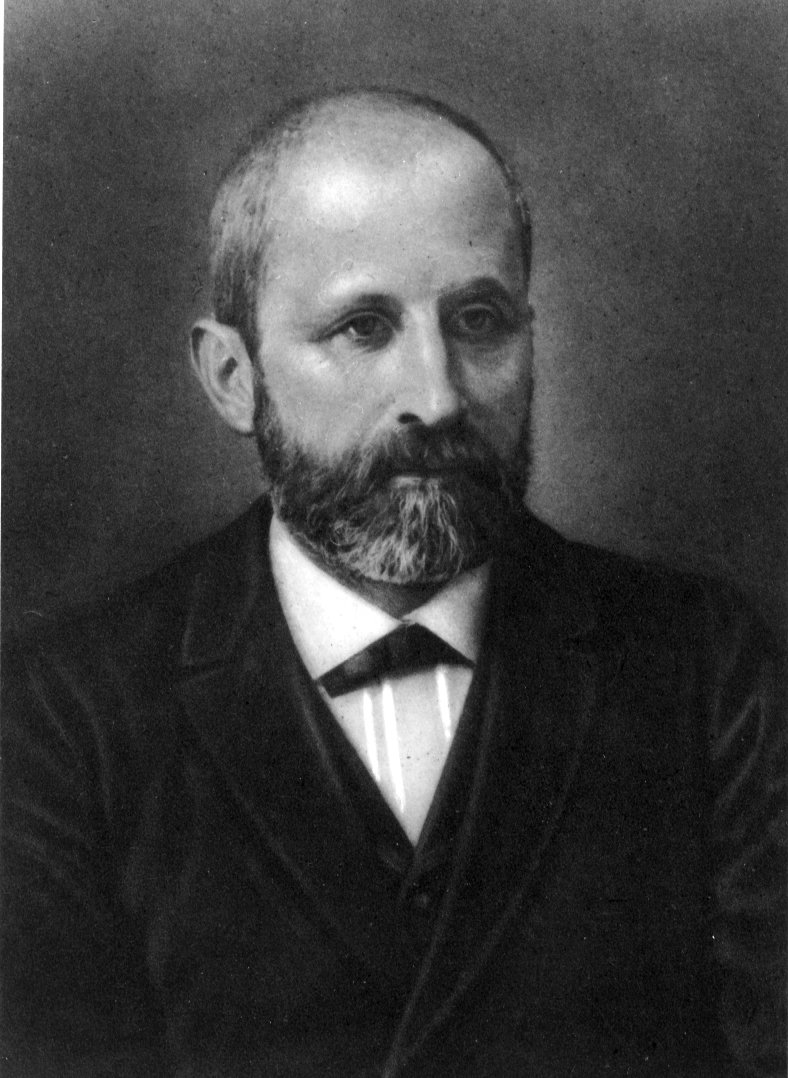
A cautela estava correta. Miescher não dissera que havia encontrado o gene, o código da vida ou uma biblioteca molecular. Ele afirmara apenas ter isolado uma substância nuclear quimicamente distinta. Seu chefe, Hoppe-Seyler, considerou o resultado extraordinário o suficiente para repetir as experiências antes de permitir a publicação. O trabalho foi realizado em 1869 e apareceu impresso em 1871.
Miescher havia encontrado aquilo que hoje chamamos DNA, embora sua nucleína ainda fosse uma preparação bruta, associada a outras moléculas. Mais tarde, estudando esperma de salmão, ele conseguiu material nuclear em concentração ainda maior. A descoberta estava diante da ciência. Faltava, porém, saber o que ela fazia.
2. Uma molécula importante demais para parecer importante
No fim do século XIX, a hereditariedade ainda não tinha endereço molecular. Os cromossomos podiam ser observados durante a divisão celular, e o trabalho de Mendel começava lentamente a ser redescoberto, mas ninguém possuía uma ponte segura entre os fatores hereditários e uma substância química específica.
As proteínas pareciam candidatas naturais. Elas eram diversas, compostas por muitos aminoácidos e capazes de assumir formas complexas. O DNA, conforme sua química era desmontada, parecia repetitivo demais. Albrecht Kossel identificou componentes das nucleínas e ajudou a caracterizar as bases nitrogenadas. Phoebus Levene mostrou que os ácidos nucleicos eram formados por unidades com açúcar, fosfato e base. Esse avanço, contudo, veio acompanhado de uma ideia errada com enorme poder de convencimento.
Levene propôs que o DNA seria formado por unidades repetidas contendo as quatro bases em proporções iguais: uma espécie de tetranucleotídeo que se repetiria monotonamente. Se a molécula fosse apenas A-C-G-T, A-C-G-T, A-C-G-T, então realmente seria difícil imaginá-la armazenando as diferenças entre uma bactéria, uma árvore e uma pessoa.
O problema deixou de ser localizar a substância. Agora era provar que uma molécula considerada quimicamente tediosa poderia carregar informação.
3. 1928 – quando bactérias mortas ensinaram bactérias vivas
Frederick Griffith não estava tentando descobrir o DNA. Ele investigava pneumococos, bactérias associadas à pneumonia, em um período no qual a doença continuava sendo uma ameaça grave. Algumas linhagens produziam uma cápsula de polissacarídeo que lhes dava aparência lisa, ou smooth, e as protegia das defesas do hospedeiro. Outras formavam colônias rugosas, rough, sem a mesma proteção.
Nos testes com camundongos, a lógica parecia simples. Bactérias S vivas eram virulentas e podiam matar. Bactérias R vivas eram combatidas pelo organismo. Bactérias S mortas pelo calor também não deveriam causar a doença.
Então Griffith combinou bactérias R vivas com restos de bactérias S mortas pelo calor. Os animais morreram. Mais desconcertante: do sangue deles foi possível recuperar bactérias S vivas e virulentas.
Alguma coisa sobrevivera ao aquecimento, atravessara o limite entre células mortas e vivas e alterara uma característica hereditária das descendentes. A bactéria R não estava apenas vestida temporariamente com a cápsula de outra bactéria. Ela passara a produzir sua própria cápsula e transmitia essa capacidade ao se reproduzir.
Griffith chamou o fenômeno de transformação. Não isolou a molécula responsável e não afirmou que fosse DNA. Seu experimento, publicado em 1928, abriu uma porta muito mais inquietante: características biológicas podiam ser transferidas por uma substância química.
A solução de um problema de bacteriologia acabava de criar uma questão central para toda a biologia. Qual era o princípio transformador?
4. Avery, MacLeod e McCarty entram na sala que a história esqueceu
No Instituto Rockefeller, em Nova York, Oswald Avery passou anos estudando pneumococos. Colin MacLeod e Maclyn McCarty trabalharam com ele para purificar o material responsável pela transformação observada por Griffith. O objetivo era eliminar, uma a uma, as explicações alternativas.
Eles prepararam extratos de bactérias do tipo S, removeram componentes celulares e testaram se a fração restante ainda conseguia transformar bactérias R. Tratamentos que destruíam proteínas não eliminavam a atividade. A remoção de lipídios e polissacarídeos também não. Enzimas que degradavam RNA não interrompiam o efeito. Quando a preparação era exposta à desoxirribonuclease, enzima que degrada DNA, a transformação desaparecia.
Em 1944, Avery, MacLeod e McCarty publicaram no Journal of Experimental Medicine um artigo com um título quase maior que sua fama: “Studies on the Chemical Nature of the Substance Inducing Transformation of Pneumococcal Types”. A conclusão era cuidadosa, mas explosiva. A fração ativa possuía as propriedades químicas do ácido desoxirribonucleico.
Isso significava que o DNA podia causar uma mudança hereditária permanente. Em linguagem moderna, uma sequência de DNA havia entrado nas bactérias receptoras, integrado informação e permitido que elas sintetizassem a cápsula.
Por que o trabalho não encerrou imediatamente a disputa? Porque ciência não é um tribunal no qual uma única prova necessariamente produz um veredicto instantâneo. Alguns pesquisadores suspeitaram que uma quantidade mínima de proteína, invisível aos métodos disponíveis, pudesse contaminar a preparação. Outros consideravam perigoso generalizar um fenômeno de bactérias para todos os seres vivos. E havia o preconceito químico: proteínas continuavam parecendo muito mais apropriadas para representar genes.
A experiência de 1944 foi uma das demonstrações mais importantes da biologia do século XX, mas não rendeu a Avery um Nobel. Ela resolveu a identidade provável do princípio transformador e criou um novo problema: como convencer uma comunidade preparada para acreditar em outra molécula?
5. A resistência não era apenas teimosia
É tentador olhar para trás e zombar dos cientistas que resistiram ao DNA. Afinal, hoje a expressão “material genético” parece inseparável das três letras. Na época, porém, a suspeita possuía razões experimentais e culturais.
Os genes eram conhecidos por seus efeitos, não por sua composição. Uma proteína podia apresentar enorme diversidade tridimensional; o DNA ainda era descrito por modelos simplificados. Os procedimentos de purificação não ofereciam a mesma segurança analítica disponível décadas depois. E o resultado de Avery vinha de uma transformação bacteriana, fenômeno que muitos ainda consideravam especial demais para sustentar uma teoria universal da hereditariedade.
A resistência mostra uma característica importante da boa ciência: uma conclusão extraordinária precisa sobreviver a testes construídos de maneiras diferentes. O artigo de 1944 não foi fraco. Foi tão profundo que exigia uma mudança de linguagem para ser plenamente aceito.
Essa mudança viria de objetos ainda mais simples do que bactérias.
6. 1952 – um vírus, dois isótopos e um liquidificador
Alfred Hershey e Martha Chase trabalharam com bacteriófagos, vírus que infectam bactérias. O fago T2 era útil porque podia ser descrito, de forma aproximada, como uma cápsula de proteína contendo DNA. Ao se fixar numa bactéria, o vírus introduzia algo capaz de comandar a produção de novos fagos.
O desafio era descobrir qual parte entrava: a proteína, o DNA ou ambas.
Hershey e Chase marcaram o DNA com fósforo radioativo, o isótopo 32P, porque o DNA possui fósforo em seu esqueleto. Em outra preparação, marcaram as proteínas com enxofre radioativo, 35S, elemento presente em certos aminoácidos, mas não no DNA. Permitiram que os fagos infectassem bactérias e depois agitaram a mistura em um liquidificador para desprender as capas virais aderidas ao exterior das células.
Após centrifugação, as bactérias formavam um sedimento. A maior parte do 32P associado ao DNA aparecia com as células e contribuía para a formação da nova geração viral. Grande parte do 35S permanecia no líquido com as capas proteicas removidas.
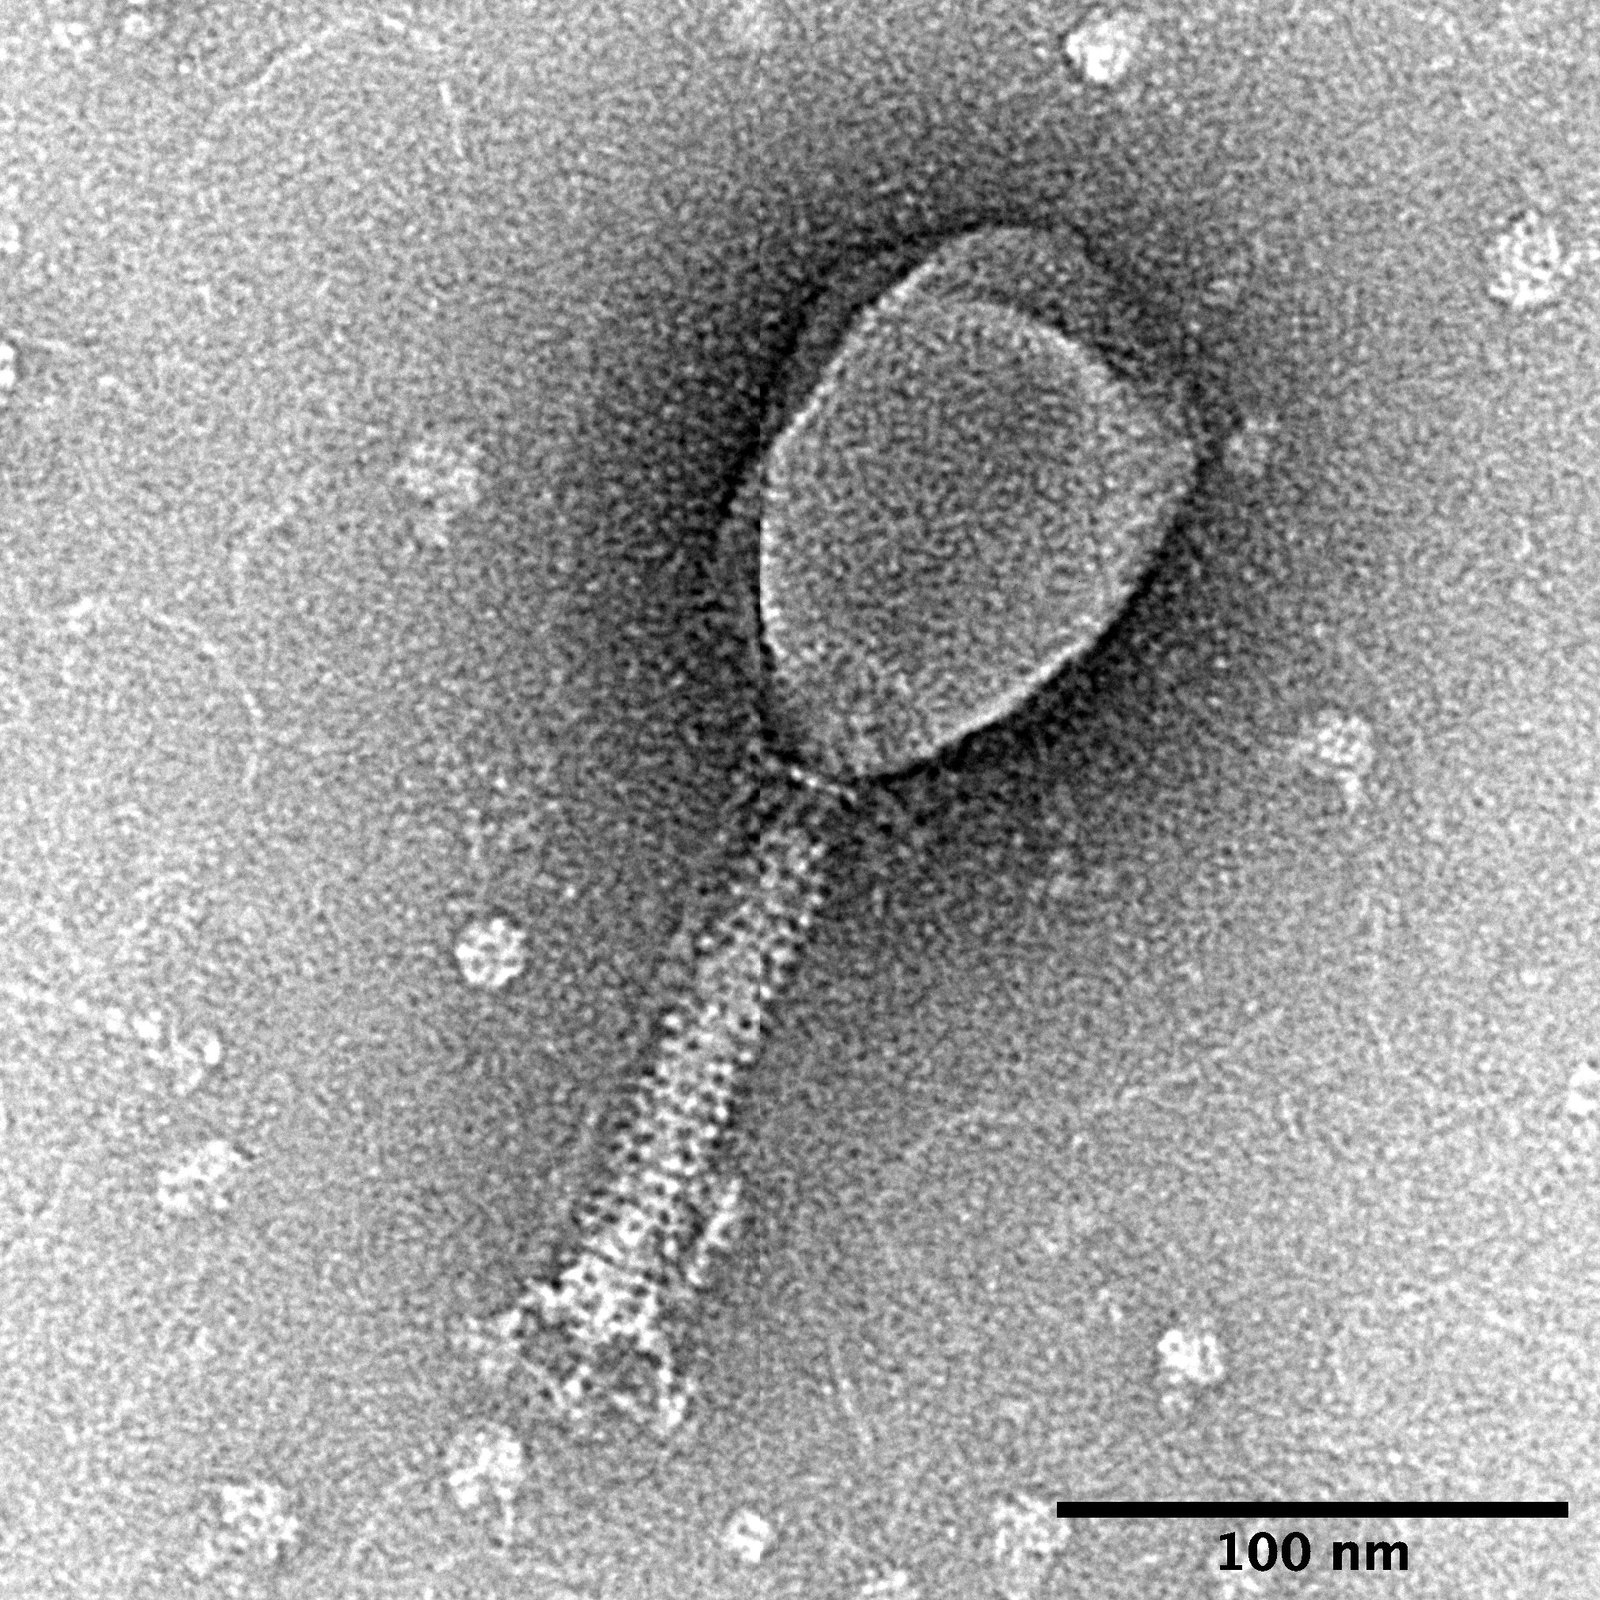
O experimento de 1952 não provava que nenhuma proteína viral jamais entrasse em uma bactéria, nem demonstrava sozinho que todo gene de todo organismo fosse DNA. Mas fornecia uma confirmação independente e visualmente poderosa: no sistema estudado, era o DNA que carregava as instruções necessárias para produzir descendentes.
Martha Chase tinha pouco mais de vinte anos e atuava como assistente de laboratório. Alfred Hershey receberia, em 1969, o Nobel por pesquisas com vírus bacterianos, compartilhado com Max Delbrück e Salvador Luria. Chase não foi incluída. A assimetria de reconhecimento não começou com a Fotografia 51 e não terminaria nela.
Com o DNA praticamente estabelecido como material genético, a pergunta mudou novamente. Como quatro componentes químicos poderiam guardar uma quantidade gigantesca de informação?
7. Chargaff desmonta a monotonia
Erwin Chargaff aplicou métodos mais precisos para medir a composição do DNA de diferentes espécies. Seus resultados atingiram diretamente a hipótese do tetranucleotídeo repetitivo.
As quatro bases não apareciam em proporções universais e iguais. A composição variava entre espécies. Isso significava que o DNA não era uma corrente monótona. Havia espaço químico para diferenças, sequências e informação.
Ao mesmo tempo, Chargaff observou duas regularidades. Em uma amostra de DNA de dupla fita, a quantidade de adenina era aproximadamente igual à de timina. A quantidade de guanina era aproximadamente igual à de citosina.
| Observação experimental | Consequência |
|---|---|
| A ≈ T | Adenina e timina aparecem em quantidades equivalentes no DNA de dupla fita. |
| G ≈ C | Guanina e citosina também aparecem em quantidades equivalentes. |
| A + T varia entre espécies | O DNA não é uma repetição universal e monótona. |
| G + C varia entre espécies | A composição pode carregar diferenças biológicas e evolutivas. |
Chargaff não transformou essas equivalências em um modelo tridimensional completo. Mas entregou uma regra que qualquer estrutura correta teria de explicar. Não bastava construir uma hélice bonita. Era necessário entender por que A acompanhava T e por que G acompanhava C.
Quando Watson conversou com Chargaff, em 1952, não causou boa impressão. Chargaff percebeu que Watson não dominava sequer algumas diferenças químicas básicas entre as bases. A ironia é impecável: um dos homens que possuía a chave encontrou um dos homens que ajudaria a construir a fechadura e concluiu que ele parecia despreparado. Em ciência, às vezes a competência chega com uma pontualidade ofensiva.
8. A corrida deixa de ser pelo material e passa a ser pela forma
No início da década de 1950, determinar estruturas moleculares era uma fronteira científica. Linus Pauling havia obtido enorme sucesso ao propor a alfa-hélice das proteínas usando química, cristalografia e modelos físicos. Seu prestígio transformava qualquer movimento seu em ameaça para os demais grupos.
Em Cambridge, James Watson e Francis Crick acreditavam que a estrutura do DNA poderia ser resolvida pela combinação de dados experimentais com construção de modelos. No King’s College London, Maurice Wilkins, Rosalind Franklin, Raymond Gosling, Alec Stokes e Herbert Wilson investigavam fibras de DNA por difração de raios X.
Os métodos eram complementares, mas as relações não eram. O King’s possuía os dados mais importantes; Cambridge tinha liberdade e entusiasmo para modelar. Entre as instituições havia cooperação, competição e limites nem sempre claros.
Watson e Crick produziram em 1951 um primeiro modelo com três cadeias e os grupos fosfato voltados para o interior. Franklin o examinou e apontou problemas fundamentais. Fosfatos carregados não poderiam ser comprimidos daquele modo no centro, e o modelo não respeitava adequadamente a água associada às fibras. A tentativa foi um fracasso público o suficiente para que Lawrence Bragg, chefe em Cambridge, mandasse a dupla se afastar temporariamente do DNA.
O problema parecia ter voltado ao início. Mas, no King’s, uma cientista estava aprendendo que o DNA não possuía uma única aparência experimental.
9. Rosalind Franklin não era a mulher que “não viu” a hélice
Rosalind Franklin chegou ao King’s College em 1951 com experiência sofisticada em difração de raios X, adquirida sobretudo em Paris. O arranjo de trabalho foi mal comunicado. John Randall, diretor da unidade, escreveu a Franklin indicando que ela assumiria a pesquisa de difração de DNA; Maurice Wilkins acreditava que ela se juntaria ao projeto em uma posição mais colaborativa ou subordinada. A confusão de autoridade rapidamente se tornou conflito pessoal e institucional.
Franklin trabalhava com rigor. Em vez de tratar todas as fibras como se fossem a mesma amostra, controlou sua hidratação e distinguiu duas formas: A, mais seca e com padrão mais difícil de interpretar, e B, mais hidratada e com assinatura helicoidal evidente.
Ela mediu dimensões, densidade e simetria. Concluiu que os grupos fosfato ficavam do lado de fora da estrutura, em contato com a água. Esse ponto derrubava a primeira tentativa de Watson e Crick. Também reconheceu o caráter helicoidal da forma B, embora conduzisse a análise da forma A com prudência e evitasse publicar um modelo final antes de fechar a matemática.
A caricatura popular apresenta Franklin como excelente técnica que produziu uma fotografia sem compreender o que via. Documentos e pesquisas históricas mais recentes tornam essa versão insustentável. Ela não era uma fornecedora passiva de dados. Era uma cientista interpretando duas conformações de uma molécula difícil, desenvolvendo uma análise independente e escrevendo trabalhos que seriam publicados ao lado do modelo de Cambridge.
O problema de Franklin não foi incapacidade de enxergar uma hélice. Foi trabalhar num ambiente em que autoridade, informação e crédito circulavam de maneira desigual.
10. A Fotografia 51: importante demais para a lenda e complexa demais para o mito
Em maio de 1952, Raymond Gosling, sob orientação de Franklin, montou uma fibra altamente hidratada de DNA para exposição a raios X. Segundo o registro de laboratório citado pelo King’s College, a amostra ficou exposta por 62 horas. O resultado foi a imagem conhecida como Fotografia 51.
O padrão escuro em forma de X é uma assinatura clássica de organização helicoidal. A posição das manchas permitia extrair medidas: repetição ao longo do eixo, espaçamento entre unidades e dimensões gerais. A ausência e a intensidade de certas reflexões também carregavam informação sobre a organização da molécula.
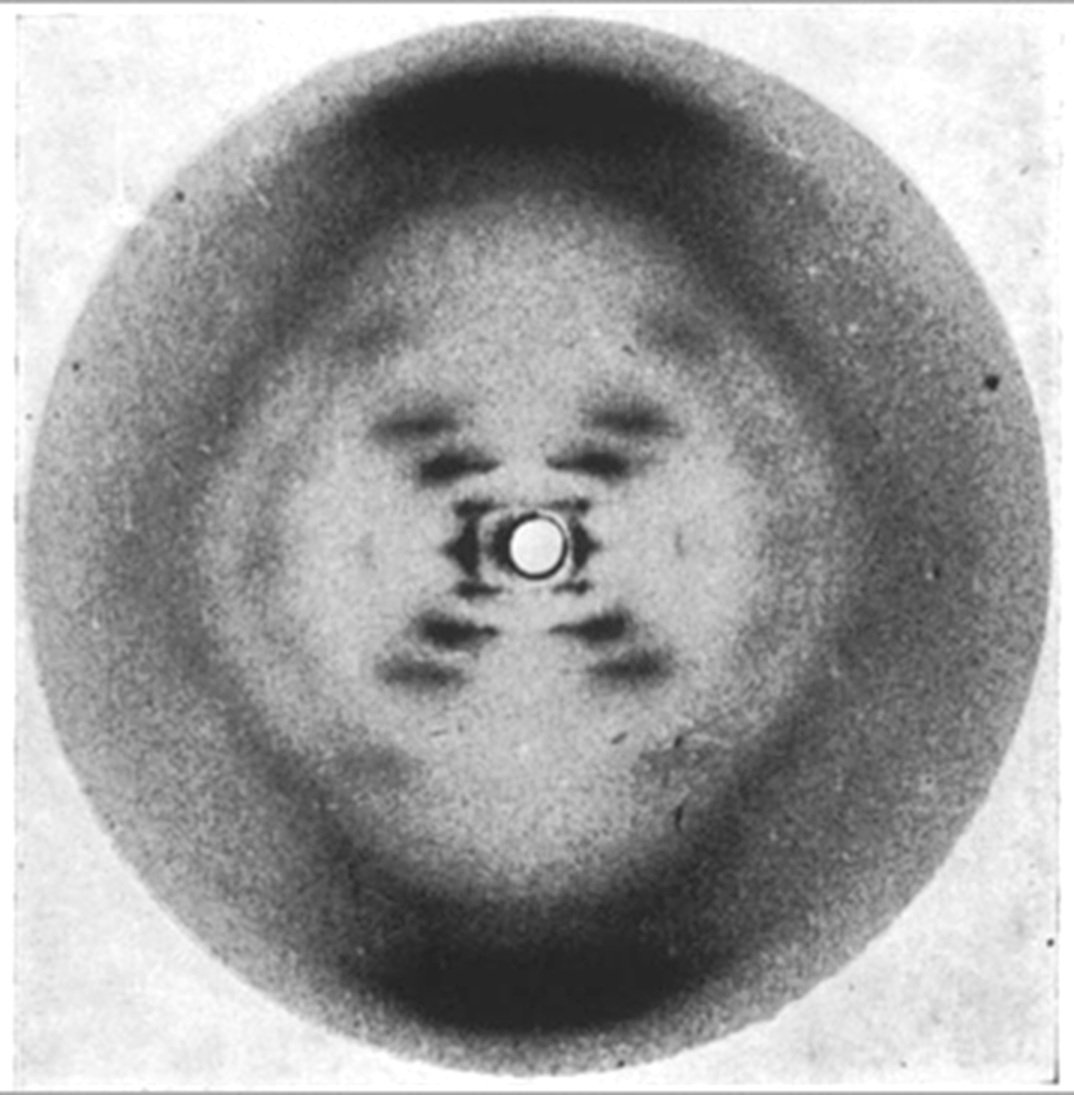
Mas a imagem não é uma fotografia comum do DNA. Ela não mostra diretamente duas fitas enroladas, como uma câmera mostraria duas cordas. É um padrão de difração que precisa ser interpretado com física e matemática. Também não contém sozinha todo o modelo: não determina automaticamente o pareamento A-T e G-C, não resolve por si só a orientação antiparalela das cadeias e não entrega todas as ligações químicas.
A Fotografia 51 foi decisiva porque eliminava muitos modelos incompatíveis e confirmava parâmetros essenciais. Reduzi-la a uma revelação instantânea diminui, paradoxalmente, o trabalho de Franklin e Gosling. O mérito não estava apenas em produzir um X elegante. Estava em preparar a amostra, controlar a umidade, obter a exposição e compreender o que o padrão autorizava concluir.
11. Como os dados chegaram a Cambridge
No começo de 1953, Maurice Wilkins mostrou a Watson a Fotografia 51. Franklin não foi consultada sobre esse uso. Em outra via, Max Perutz entregou a Crick um relatório do Medical Research Council que continha resultados do grupo do King’s, incluindo medidas de Franklin. O relatório não era um documento industrial secreto; circulava num comitê de avaliação. Mesmo assim, Franklin não sabia que seus dados estavam sendo usados daquela forma para construir o modelo concorrente.
É correto chamar isso de roubo? A palavra cria uma cena simples: alguém abre uma gaveta, furta uma fotografia e foge com a descoberta. Não foi assim. Gosling havia voltado à supervisão de Wilkins enquanto Franklin se preparava para deixar o King’s, e a administração considerava os dados parte do trabalho da unidade. O relatório também havia sido fornecido a Perutz dentro de uma estrutura institucional.
Mas dizer que não houve furto físico não encerra a questão ética. Watson e Crick receberam dados ainda não publicados sem uma conversa clara com a cientista que os produzira e analisara. Esses dados reduziram incertezas decisivas. A assimetria não precisa ser transformada em espionagem para continuar sendo uma assimetria.
Pesquisas históricas publicadas em 2023 também recuperaram documentos que mostram uma colaboração mais complexa do que a narrativa de Watson popularizada em seu livro de 1968. Franklin era tratada por contemporâneos como participante importante da solução, não como alguém incapaz de entender os próprios resultados. A história posterior endureceu papéis que, em 1953, eram mais fluidos.
O corte factual mais honesto é este: Watson e Crick não obtiveram o modelo apenas da Fotografia 51, mas os dados de Franklin e do King’s foram essenciais. Eles fizeram uma síntese teórica extraordinária; essa síntese dependeu de evidências que não produziram e cujo uso não foi adequadamente discutido com todos os envolvidos.
12. A química finalmente encontra a geometria
Com as dimensões experimentais em mãos, Watson e Crick voltaram à construção de modelos. O esqueleto de açúcar e fosfato precisava ficar no exterior. As bases deveriam apontar para o interior. As duas cadeias precisavam acomodar as medidas de difração e a densidade observada.
Um detalhe químico poderia ter arruinado tudo. Watson inicialmente tentava combinar bases usando formas tautoméricas inadequadas. Jerry Donohue, químico que dividia o ambiente de trabalho em Cambridge, alertou que aquelas representações não eram as formas predominantes. Corrigida a química, os pares se encaixaram.
Adenina com timina formava um par de largura compatível. Guanina com citosina também. Um par de duas purinas seria largo demais; duas pirimidinas seriam estreitas demais. A combinação de uma purina com uma pirimidina mantinha o diâmetro aproximadamente constante.
As regras de Chargaff deixavam de ser coincidência. Se A se emparelhava com T e G com C, suas proporções globais necessariamente se acompanhariam.
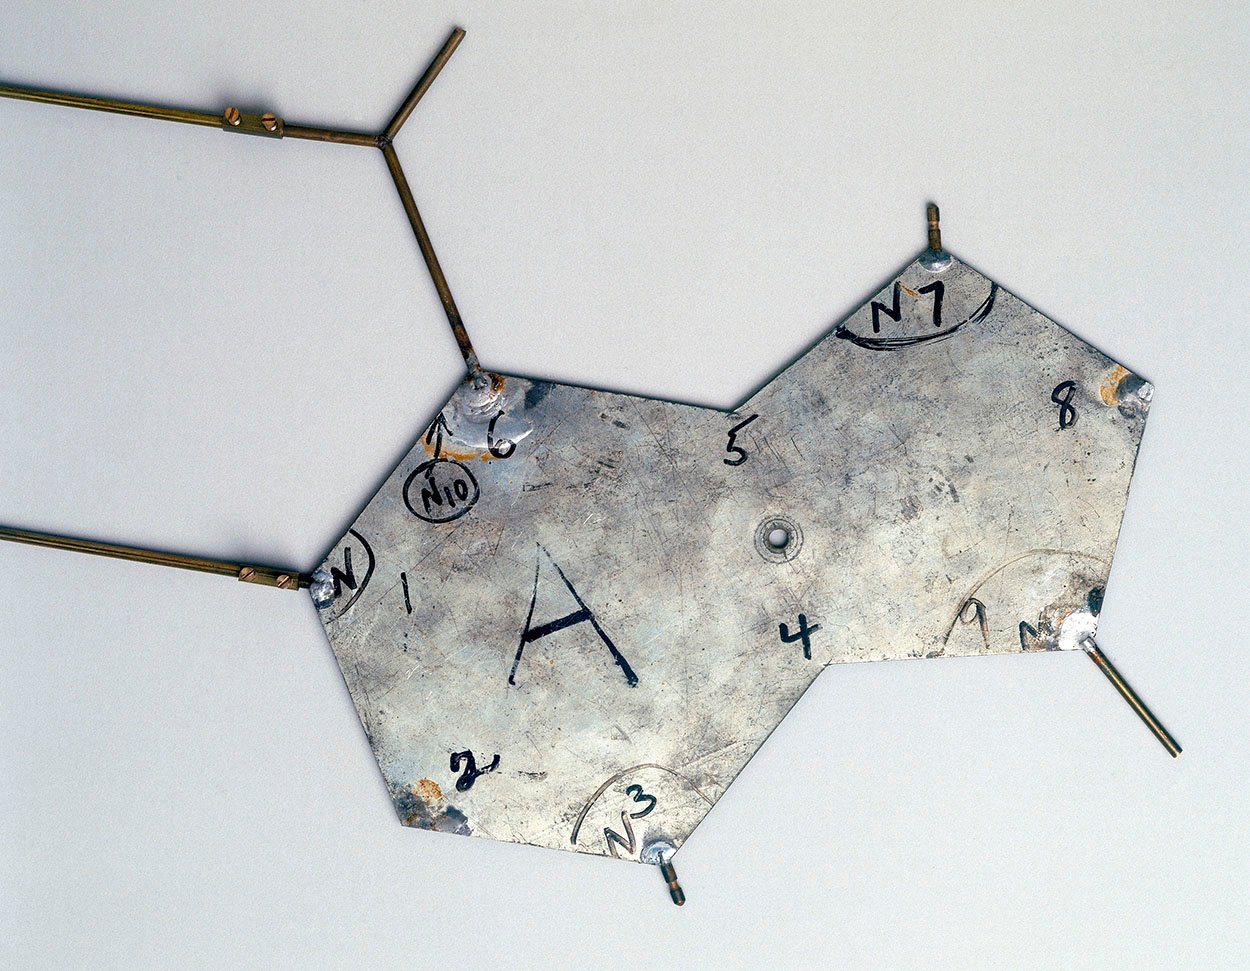
As cadeias corriam em sentidos opostos, característica hoje chamada antiparalela. O modelo apresentava cerca de 2 nanômetros de diâmetro, bases empilhadas com separação aproximada de 0,34 nanômetro e uma volta da hélice em torno de 3,4 nanômetros. A versão moderna da forma B considera em média cerca de 10,5 pares por volta, mas as dimensões essenciais já estavam ali.
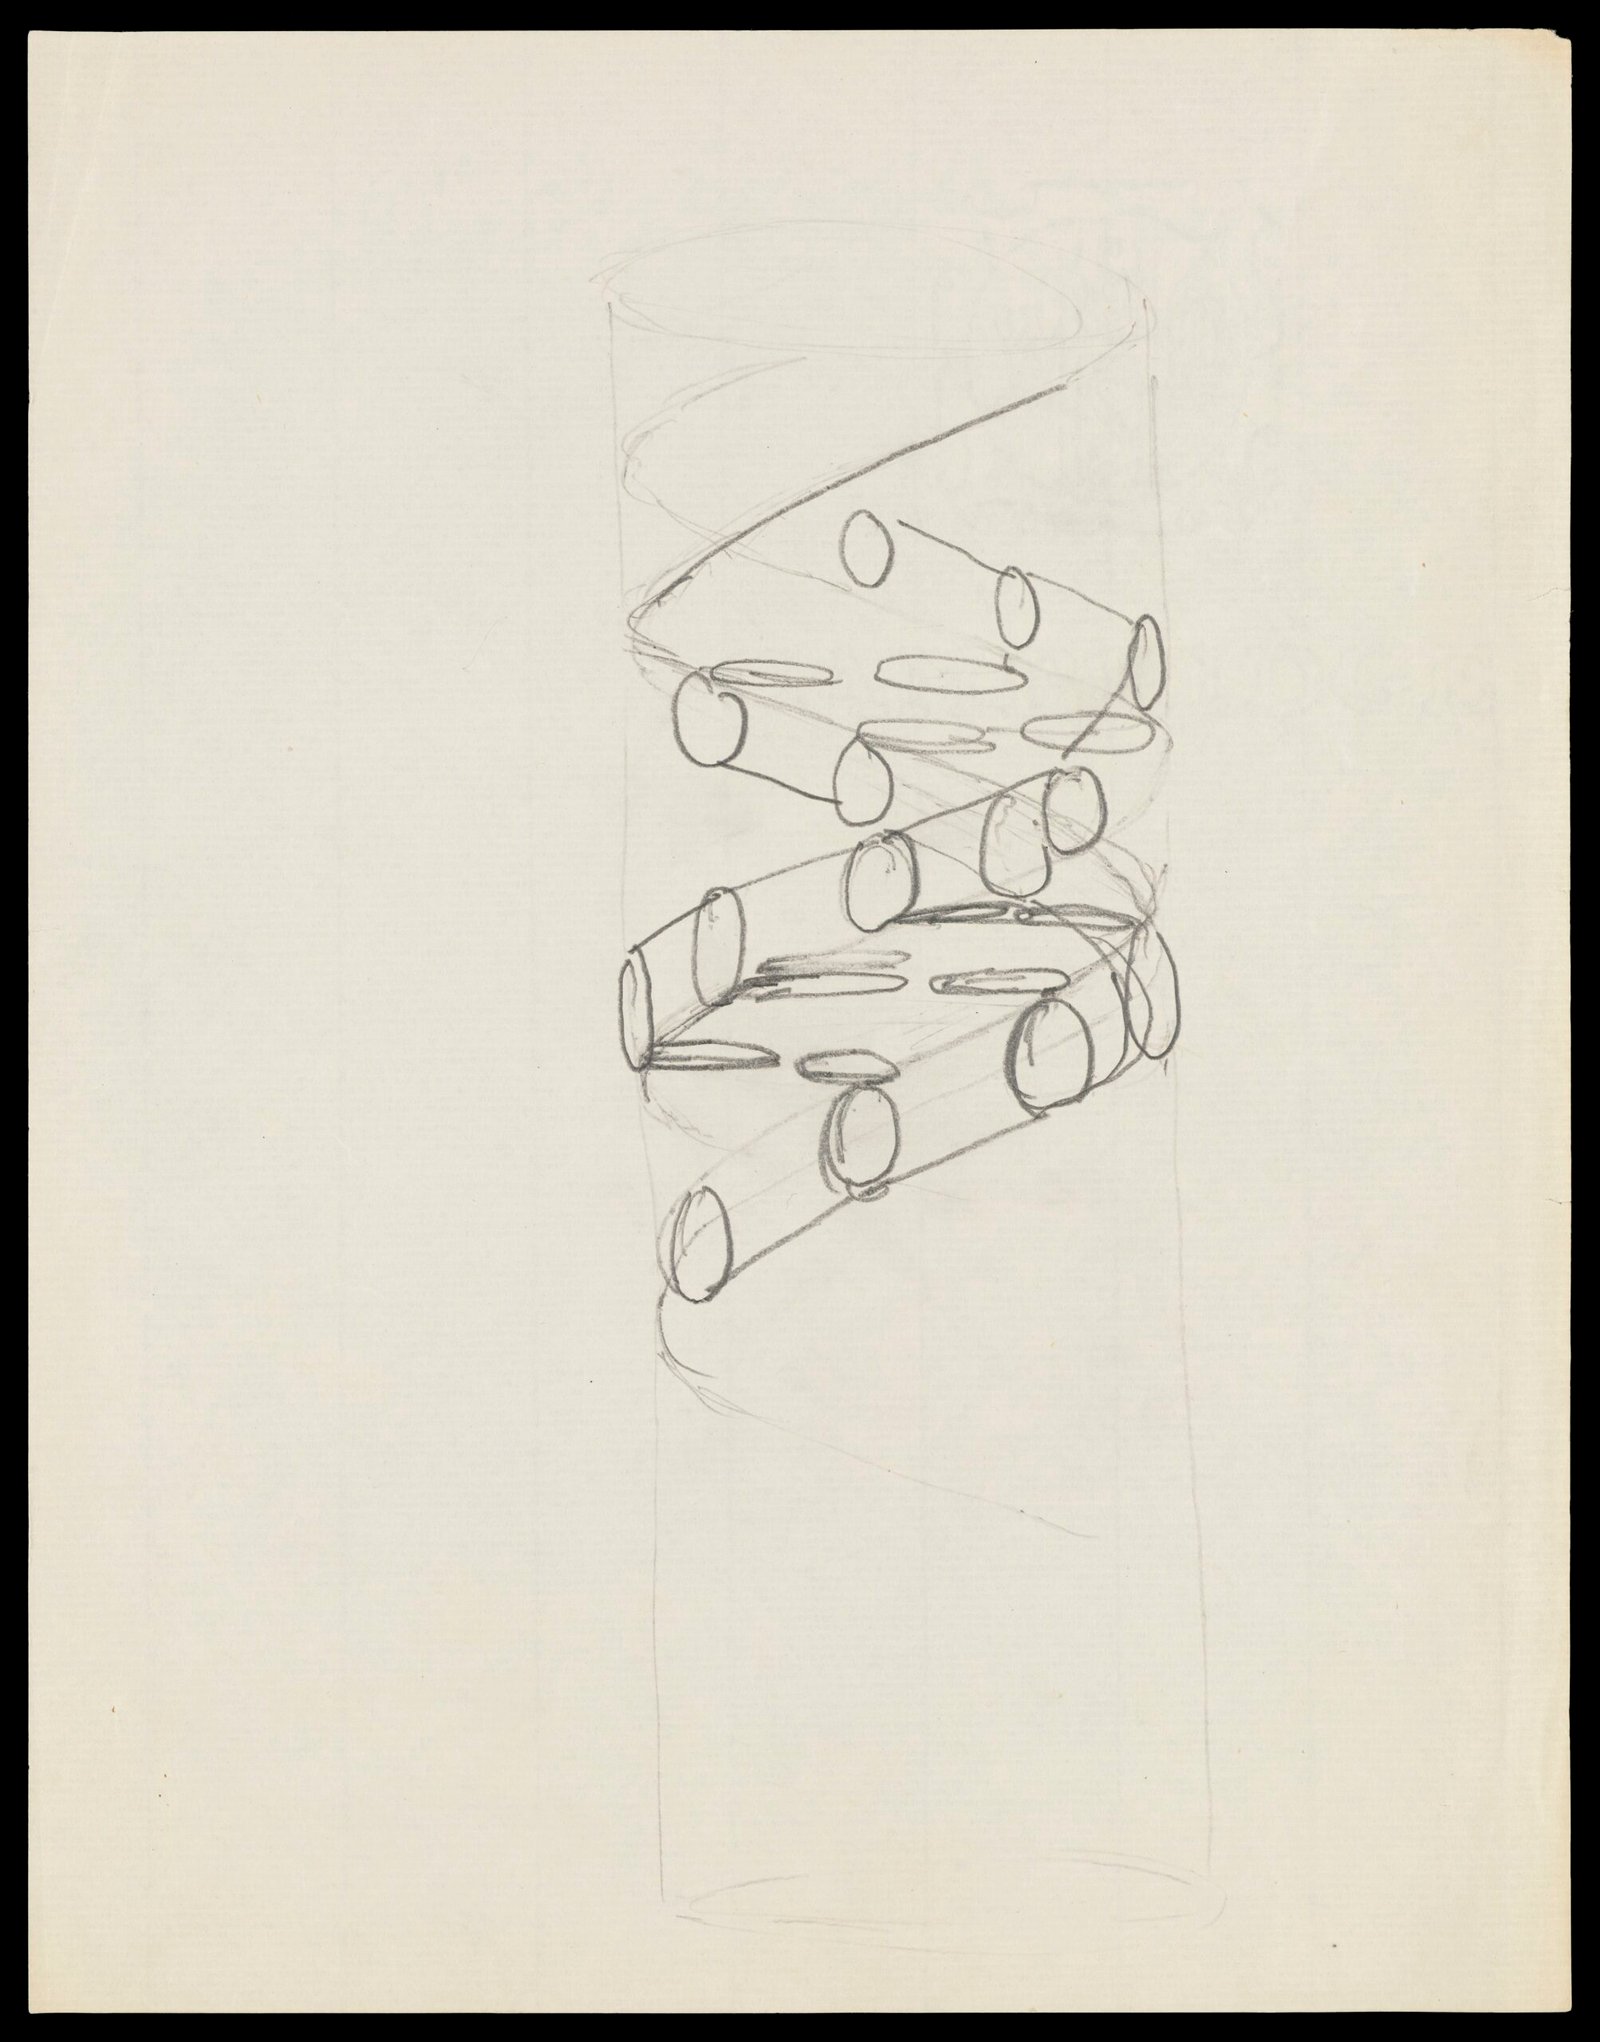
Credit: Wellcome Library, London. Wellcome Images
images@wellcome.ac.uk
http://wellcomeimages.org
Pencil sketch of the DNA double helix by Francis Crick. It shows a right-handed helix and the nucleotides of the two anti-parallel strands.
Pencil drawing
[ 19 By: Francis Harry Compton Crick[“DNA”]
Published: [c 1953]
Copyrighted work available under Creative Commons Attribution only licence CC BY 4.0 http://creativecommons.org/licenses/by/4.0/
O modelo era elegante, mas sua beleza não era decorativa. A estrutura reunia restrições químicas, cristalográficas e biológicas. Ela explicava por que a molécula mantinha largura constante, por que as proporções de Chargaff funcionavam e, sobretudo, sugeria um mecanismo de cópia.
13. O segredo não era a hélice. Era a complementaridade
A dupla hélice se tornou ícone porque é visualmente memorável. Mas a característica biologicamente revolucionária estava no pareamento específico das bases.
Se as duas cadeias fossem separadas, cada uma apresentaria uma sequência de bases. Como A exige T e G exige C, cada fita poderia funcionar como molde para reconstruir sua complementar. Uma molécula produziria duas, cada nova dupla conservando uma fita anterior e sintetizando uma nova.
Watson e Crick registraram essa consequência em seu artigo com uma discrição quase teatral: observaram que o pareamento específico sugeria imediatamente um possível mecanismo de cópia do material genético.
Esse “imediatamente” carregava décadas de trabalho alheio. Sem Miescher não havia substância. Sem Griffith não havia transformação. Sem Avery, MacLeod e McCarty faltava a identidade do princípio. Sem Hershey e Chase, a resistência teria durado mais. Sem Chargaff, faltava a regra dos pares. Sem Franklin, Gosling, Wilkins, Stokes e Wilson, faltavam medidas estruturais. Sem Donohue, a química das bases poderia permanecer errada. Sem Watson e Crick, essas peças talvez demorassem a ganhar uma arquitetura comum.
A descoberta não diminui quando é dividida. Ela fica maior.
14. 25 de abril de 1953 – três artigos, não um
A revista Nature publicou em 25 de abril de 1953 uma sequência de três trabalhos sobre DNA. O primeiro, de Watson e Crick, apresentava o modelo da dupla hélice. O segundo, de Maurice Wilkins, Alec Stokes e Herbert Wilson, trazia evidências de difração. O terceiro, de Rosalind Franklin e Raymond Gosling, apresentava a configuração molecular do timonucleato de sódio e dados experimentais da forma B.
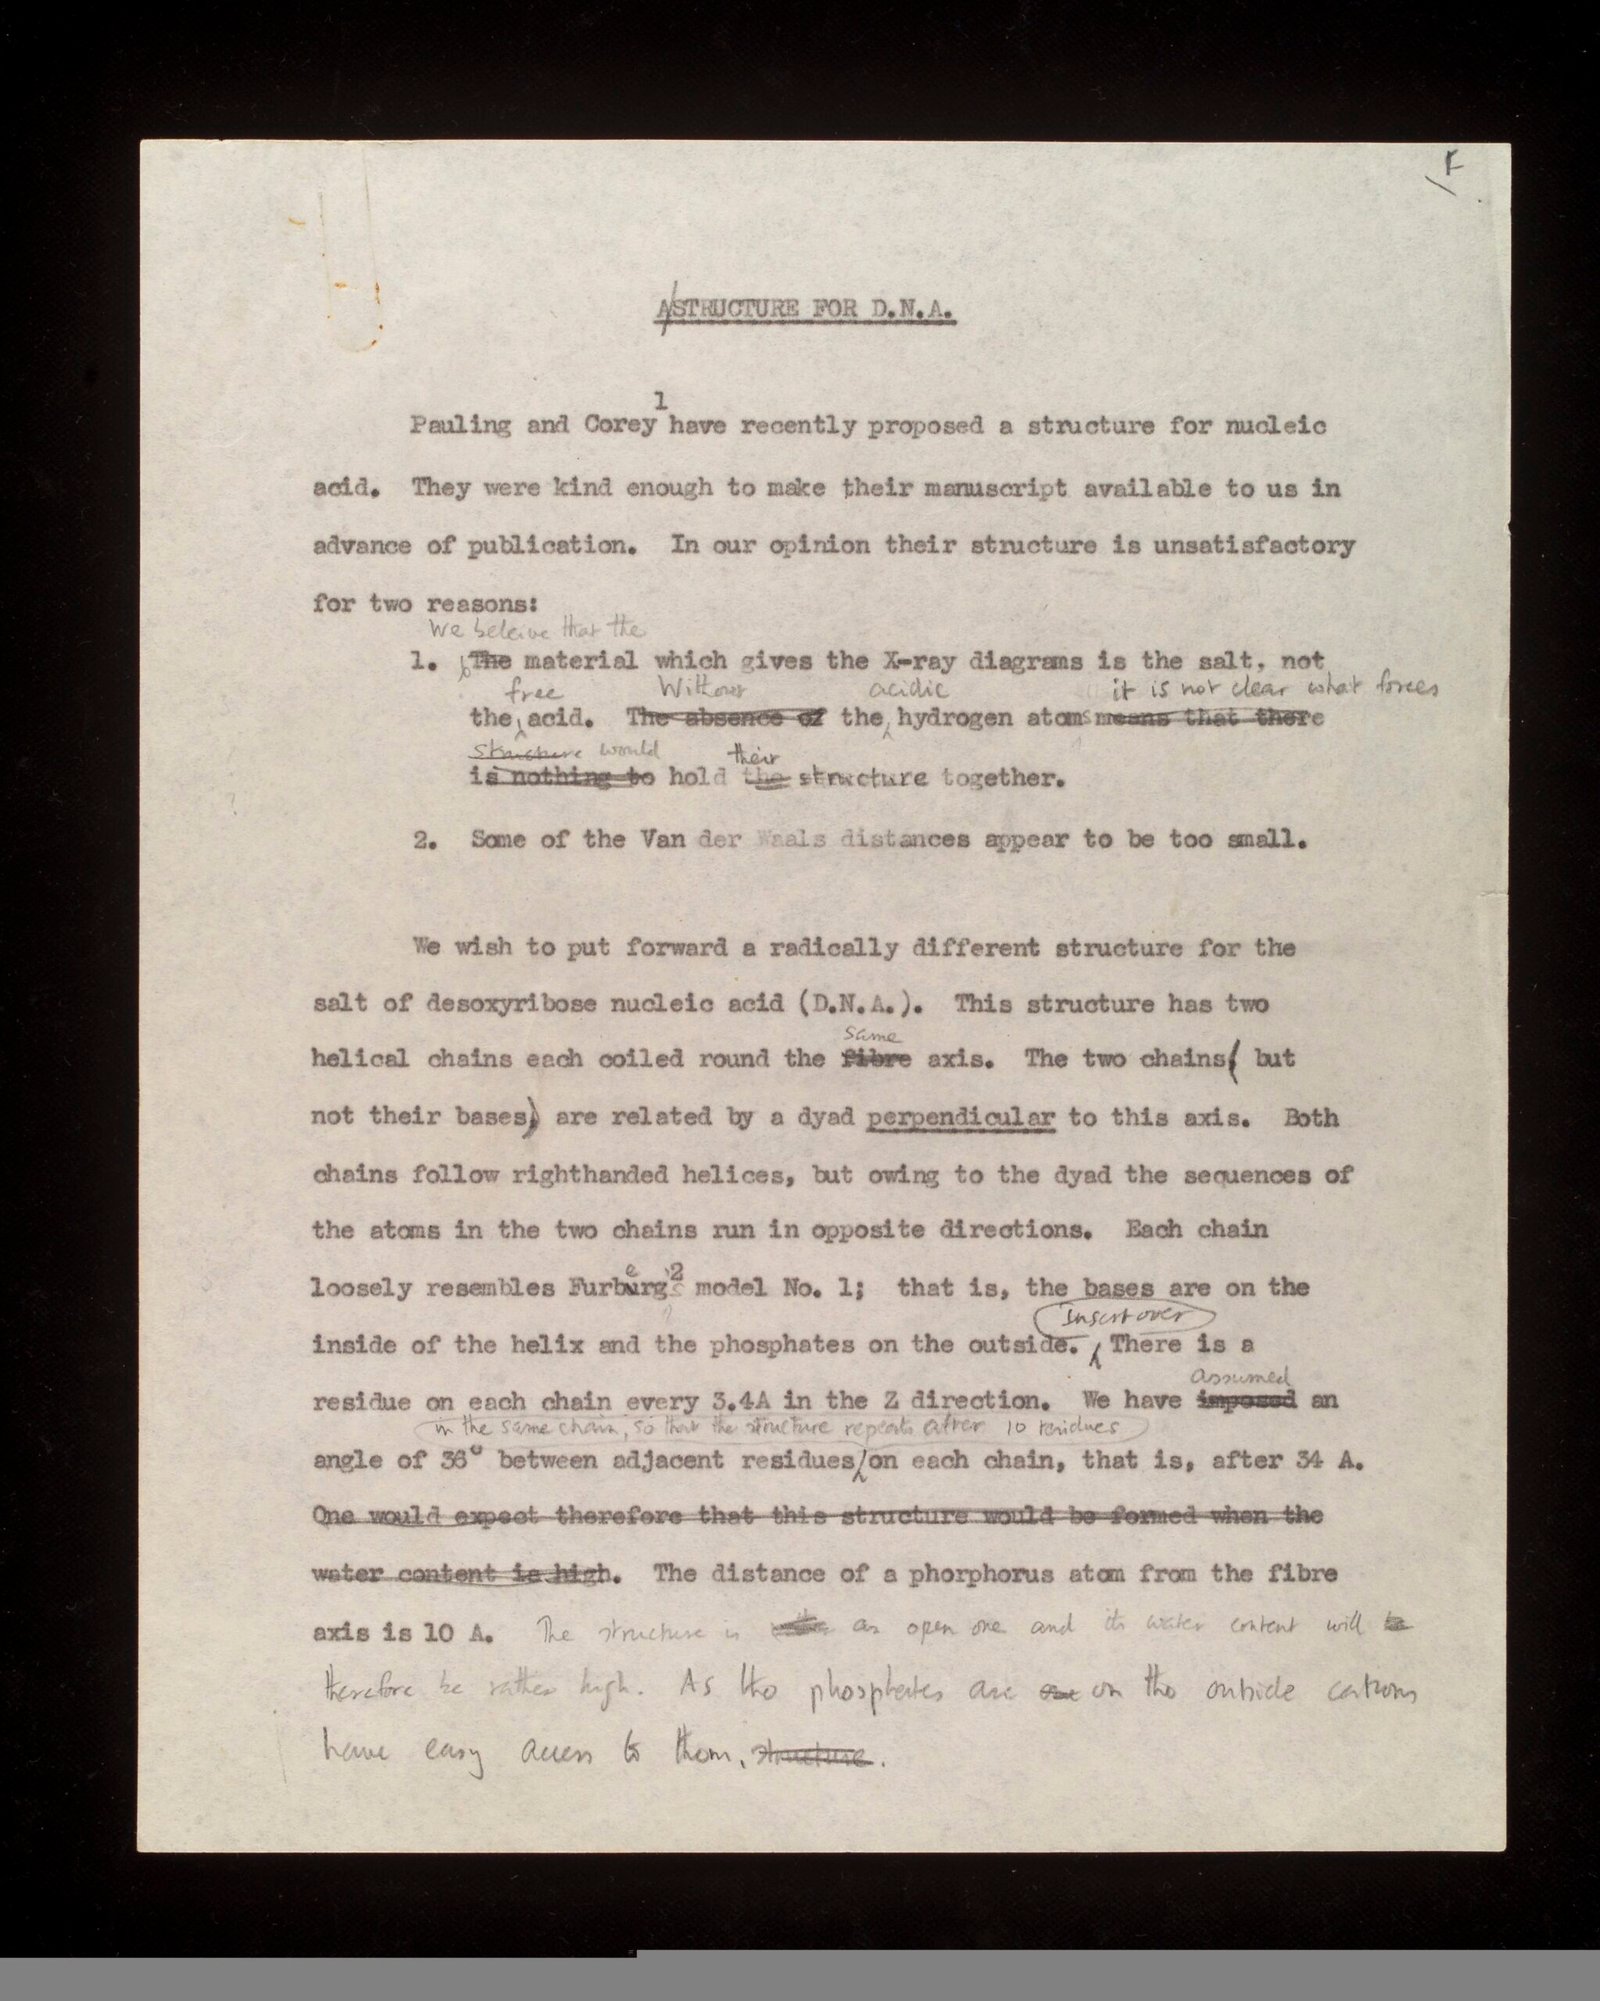
Credit: Wellcome Library, London. Wellcome Images
images@wellcome.ac.uk
http://wellcomeimages.org
Part 1 of an early draft of the first Watson and Crick paper published as “Molecular structure of nucleic acids: a structure for deoxyribose nucleic acid,” Nature, 171: 4356 (25 April, 1953), pp 737-8
1953 By: Francis Harry Compton Crick and James Dewey WatsonCrick Papers
Published: –
Copyrighted work available under Creative Commons Attribution only licence CC BY 4.0 http://creativecommons.org/licenses/by/4.0/
O arranjo editorial fazia os trabalhos experimentais parecerem confirmações do modelo apresentado primeiro. Na realidade, parte importante daqueles dados já existia antes da estrutura final ser montada. Franklin e Gosling haviam preparado trabalhos sem conhecer inicialmente o modelo de Cambridge.
Watson e Crick reconheceram que sua estrutura se apoiava em resultados experimentais não publicados e nas ideias dos pesquisadores do King’s. A formulação, porém, não transmitia ao leitor a extensão exata dessa dependência. Em artigo posterior, foram mais claros ao admitir que, sem os dados de Franklin, a formulação da estrutura teria sido muito improvável, se não impossível.
O artigo principal possuía pouco mais de uma página e não apresentava uma longa série de experiências novas. Sua força estava na síntese. Watson e Crick fizeram algo que a ciência valoriza imensamente: construíram um modelo simples o bastante para ser compreendido e restritivo o bastante para produzir consequências testáveis.
Mas um modelo, por mais poderoso, ainda precisava sobreviver ao futuro.
15. 1958 – a cópia do DNA entra na centrífuga
O pareamento complementar sugeria replicação semiconservativa: cada molécula-filha deveria conter uma fita antiga e uma fita nova. Havia alternativas. Na replicação conservativa, a molécula original permaneceria inteira e uma cópia completamente nova seria criada. Na dispersiva, fragmentos antigos e novos ficariam misturados em ambas as fitas.
Matthew Meselson e Franklin Stahl cultivaram bactérias em meio contendo nitrogênio pesado, 15N, fazendo com que o DNA se tornasse mais denso. Depois transferiram as células para meio com 14N e acompanharam as moléculas ao longo das gerações usando centrifugação em gradiente de densidade.
Após uma geração, surgiu uma faixa de densidade intermediária, incompatível com o modelo conservativo. Após duas, apareceram uma faixa intermediária e uma leve, como previa a replicação semiconservativa.
O experimento, publicado em 1958, é frequentemente chamado de um dos mais belos da biologia. Ele não “descobriu o DNA” nem “descobriu a dupla hélice”. Fez algo igualmente importante: colocou à prova uma consequência central do modelo e mostrou que a lógica de cópia sugerida pela complementaridade acontecia nas células.
Uma estrutura científica vale não porque parece inevitável depois de conhecida, mas porque continua correta quando experiências são desenhadas para derrubá-la.
16. O Nobel e a matemática imperfeita do reconhecimento
Em 1962, o Prêmio Nobel de Fisiologia ou Medicina foi concedido a James Watson, Francis Crick e Maurice Wilkins por descobertas relativas à estrutura molecular dos ácidos nucleicos e sua importância para a transferência de informação nos seres vivos.
Rosalind Franklin havia morrido em 1958, aos 37 anos, de câncer de ovário. O Nobel não é normalmente concedido postumamente. Portanto, afirmar simplesmente que ela foi “retirada” de um prêmio de 1962 ignora essa regra e a cronologia. Ao mesmo tempo, usar a regra como resposta completa ignora uma questão maior: por que o papel de Franklin permaneceu tão reduzido na narrativa pública durante tanto tempo?
O prêmio também não incluiu Raymond Gosling, Alec Stokes, Herbert Wilson, Erwin Chargaff, Oswald Avery, Colin MacLeod, Maclyn McCarty, Frederick Griffith, Martha Chase ou Friedrich Miescher. Alguns já haviam morrido; outros pertenciam a etapas diferentes da história; nenhum prêmio conseguiria acomodar oito décadas de construção.
O caso mostra o limite estrutural de premiar ciência como se descobertas possuíssem proprietários únicos. Prêmios escolhem pessoas e datas. A ciência real acumula técnicas, erros corrigidos, amostras, conversas, instrumentos, relatórios e resultados que podem levar décadas para adquirir significado.
17. Então, quem descobriu o DNA?
A resposta depende da pergunta exata.
Se a pergunta for quem isolou pela primeira vez a substância que hoje chamamos DNA, a resposta é Friedrich Miescher, em 1869.
Se for quem mostrou que uma substância podia transferir uma característica hereditária, a resposta começa com Frederick Griffith, em 1928.
Se for quem identificou essa substância transformadora como DNA, a resposta é Oswald Avery, Colin MacLeod e Maclyn McCarty, em 1944.
Se for quem produziu uma confirmação independente usando bacteriófagos, a resposta é Alfred Hershey e Martha Chase, em 1952.
Se for quem encontrou as relações quantitativas entre as bases que tornaram o pareamento inteligível, a resposta inclui Erwin Chargaff.
Se for quem produziu e interpretou dados cruciais de difração para determinar a geometria do DNA, a resposta inclui Rosalind Franklin, Raymond Gosling, Maurice Wilkins, Alec Stokes e Herbert Wilson.
Se for quem formulou o modelo correto da dupla hélice e percebeu o poder informacional da complementaridade, a resposta é James Watson e Francis Crick, em 1953, com contribuição química importante de Jerry Donohue e dependência direta dos dados do King’s.
| Se a pergunta é… | A resposta historicamente sustentada é… |
|---|---|
| Quem isolou a molécula? | Friedrich Miescher, em 1869. |
| Quem revelou a transformação hereditária? | Frederick Griffith, em 1928. |
| Quem identificou o princípio como DNA? | Avery, MacLeod e McCarty, em 1944. |
| Quem reforçou que DNA era o material genético? | Alfred Hershey e Martha Chase, em 1952. |
| Quem mediu a estrutura? | Franklin, Gosling, Wilkins, Stokes e Wilson, entre 1951 e 1953. |
| Quem construiu o modelo correto? | James Watson e Francis Crick, em 1953. |
Não é necessário escolher entre “Watson e Crick fizeram tudo” e “Watson e Crick não fizeram nada”. As duas afirmações são historicamente pobres. Eles realizaram uma síntese extraordinária. Franklin e Gosling produziram evidências extraordinárias. Avery e seus colegas resolveram uma identidade molecular extraordinária. Miescher encontrou a substância antes que a ciência soubesse o que perguntar a ela.
18. O que a versão curta apaga
A versão escolar costuma saltar de Mendel para Watson e Crick com uma breve parada na Fotografia 51. Esse caminho é eficiente para memorizar nomes, mas destrói o mecanismo da descoberta.
Ele apaga o fato de que uma evidência pode existir por décadas sem teoria capaz de interpretá-la. Apaga a importância de resultados negativos, como a destruição seletiva do princípio transformador pela DNase. Apaga a resistência razoável diante de uma conclusão que exigia abandonar proteínas como portadoras universais da hereditariedade. Apaga técnicos, estudantes, assistentes e pesquisadores cujos dados chegam ao modelo final sem receber a mesma visibilidade. E apaga a diferença entre obter uma medida e construir uma explicação.
Também transforma Rosalind Franklin em símbolo antes de preservá-la como cientista. Reconhecer a desigualdade que enfrentou é indispensável. Reduzi-la apenas a vítima, contudo, repete outro tipo de apagamento. Franklin foi uma pesquisadora de primeira linha, com trabalhos importantes sobre carvão e uma carreira posterior excepcional em estruturas virais. Sua relevância não depende de imaginar que ela teria montado sozinha o mesmo modelo de Watson e Crick na semana seguinte.
O rigor histórico suporta uma conclusão menos cinematográfica e mais poderosa: pessoas diferentes estavam resolvendo problemas diferentes, e a dupla hélice apareceu quando essas soluções finalmente puderam ocupar a mesma estrutura.
Epílogo – a escada que só existe porque cada degrau veio de algum lugar
O DNA se tornou metáfora de essência. Falamos em DNA de uma empresa, DNA de uma cultura, DNA de uma ideia. A molécula virou sinônimo daquilo que define e permanece.
Sua própria história contradiz a fantasia de essência individual. A descoberta do DNA não possui um único autor, um único laboratório ou um único momento fundador. Ela tem ataduras hospitalares, camundongos, colônias bacterianas, enzimas, radioisótopos, um liquidificador, fibras hidratadas, filmes fotográficos, peças metálicas e folhas cobertas de cálculos.
Tem também ambição, competição, desentendimento, generosidade, preconceito e reconhecimento tardio. Em outras palavras, tem o mesmo material imperfeito de toda obra humana.
Watson e Crick encontraram uma forma capaz de explicar como a informação podia ser copiada. Franklin e Gosling mostraram limites geométricos sem os quais aquela forma dificilmente existiria. Chargaff revelou a parceria secreta das bases. Hershey, Chase, Avery, MacLeod, McCarty e Griffith ligaram a molécula à hereditariedade. Miescher abriu a história sem saber que a estava abrindo.
A dupla hélice é uma escada. A descoberta também. E nenhum dos degraus chegou sozinho.
Perguntas rápidas
Quem descobriu o DNA primeiro?
Friedrich Miescher isolou em 1869 a substância que chamou de nucleína, hoje reconhecida como DNA associado a outros componentes nucleares.
Watson e Crick descobriram o DNA?
Eles não descobriram a existência da molécula. Em 1953, formularam o modelo correto de sua estrutura em dupla hélice e explicaram como o pareamento complementar poderia permitir a cópia da informação genética.
Qual foi a contribuição de Rosalind Franklin?
Franklin conduziu a análise rigorosa das formas A e B do DNA, determinou parâmetros estruturais, concluiu que os fosfatos ficavam no exterior e, com Raymond Gosling, produziu a Fotografia 51. Seus dados foram essenciais para restringir e validar o modelo de Watson e Crick.
Por que Avery não recebeu o mesmo reconhecimento?
O trabalho de Avery, MacLeod e McCarty foi recebido com cautela, em parte por suspeitas de contaminação e pela resistência à ideia de que DNA, e não proteína, fosse o material hereditário. Hoje o artigo de 1944 é reconhecido como uma demonstração fundamental da biologia molecular.
A Fotografia 51 mostra diretamente a dupla hélice?
Não. Ela é um padrão de difração de raios X. O X central indica organização helicoidal e as reflexões permitem calcular dimensões, mas a imagem precisa de interpretação física e não entrega sozinha todo o modelo químico nem o pareamento das bases.
Referências essenciais
- Miescher e a primeira extração de DNA: National Human Genome Research Institute, “1869: DNA First Isolated”. https://www.genome.gov/25520232/online-education-kit-1869-dna-first-isolated
- Lamm, E.; Harman, O.; Veigl, S. J. “Before Watson and Crick in 1953 Came Friedrich Miescher in 1869”. Genetics, 2020. https://pmc.ncbi.nlm.nih.gov/articles/PMC7268995/
- Griffith, F. “The Significance of Pneumococcal Types”. Journal of Hygiene, 1928. https://pmc.ncbi.nlm.nih.gov/articles/PMC2167760/
- Avery, O. T.; MacLeod, C. M.; McCarty, M. “Studies on the Chemical Nature of the Substance Inducing Transformation of Pneumococcal Types”. Journal of Experimental Medicine, 1944. https://pmc.ncbi.nlm.nih.gov/articles/PMC2135445/
- Rockefeller University, exposição “The Transforming Principle: DNA, The Molecule of Heredity”. https://digitalcommons.rockefeller.edu/transforming-principle-dna/
- Hershey, A. D.; Chase, M. “Independent Functions of Viral Protein and Nucleic Acid in Growth of Bacteriophage”. Journal of General Physiology, 1952. https://pmc.ncbi.nlm.nih.gov/articles/PMC2147348/
- DNA Learning Center, “Chargaff’s Ratios”. https://dnalc.cshl.edu/view/15495-Chargaff-s-ratios-3D-animation-with-narration.html
- King’s College London, “The story behind Photograph 51”. https://www.kcl.ac.uk/the-story-behind-photograph-51
- Cobb, M.; Comfort, N. “What Rosalind Franklin truly contributed to the discovery of DNA’s structure”. Nature, 2023. https://www.nature.com/articles/d41586-023-01313-5
- University of Cambridge, “Discovering the secret of life – 70th anniversary of the DNA double helix”. https://www.cam.ac.uk/stories/DNA-structure-discovery-cambridge-70th-anniversary
- Watson, J. D.; Crick, F. H. C. “Molecular Structure of Nucleic Acids: A Structure for Deoxyribose Nucleic Acid”. Nature 171, 737-738, 1953. https://doi.org/10.1038/171737a0
- Wilkins, M. H. F.; Stokes, A. R.; Wilson, H. R. “Molecular Structure of Deoxypentose Nucleic Acids”. Nature 171, 738-740, 1953. https://doi.org/10.1038/171738a0
- Franklin, R. E.; Gosling, R. G. “Molecular Configuration in Sodium Thymonucleate”. Nature 171, 740-741, 1953. https://doi.org/10.1038/171740a0
- Meselson, M.; Stahl, F. W. “The Replication of DNA in Escherichia coli”. PNAS 44, 671-682, 1958. https://doi.org/10.1073/pnas.44.7.671
- Nobel Prize, “The 1962 Nobel Prize in Physiology or Medicine”. https://www.nobelprize.org/prizes/medicine/1962/speedread/